Biologie · Seconde · 14 min de lecture
La dérive génétique : quand le hasard seul fait évoluer
Évolution aléatoire des fréquences alléliques dans les petites populations, effet fondateur, goulot d'étranglement, modélisation par tirages aléatoires.
Chapitre du programme : La Terre, la vie et l'organisation du vivant
Bloc 1 sur 7 · Comprendre
Comprendre : un tirage au sort à chaque génération
Tu viens d'apprendre qu'une pression du milieu peut trier les allèles : c'est la sélection naturelle. Voici le second mécanisme d'évolution du programme — et il est plus difficile à accepter, parce qu'il ne repose sur aucun avantage. La dérive génétique est la modification, au fil des générations, des fréquences des allèles d'une population sous le seul effet du hasard.
D'où vient ce hasard ? De l'échantillonnage. À chaque génération, les allèles transmis sont un tirage parmi les allèles des parents : quels individus se rencontrent, combien de descendants chacun laisse, quel allèle de chaque paire passe dans chaque cellule reproductrice — tout cela comporte une part de loterie, sans lien avec la valeur des allèles. Or un tirage ne reproduit jamais exactement les proportions du sac d'où il vient.
Fais l'expérience en pensée — c'est la modélisation par tirages aléatoires que propose ton programme, et que tu peux réaliser avec un sac de billes ou un tableur. Un sac contient billes rouges et billes vertes : fréquences, % et %. Tires-en au hasard pour fonder le « sac » suivant : tu obtiendras rarement rouges exactement — souvent , parfois , à l'occasion . Le nouveau sac a d'autres fréquences que l'ancien, sans qu'aucune couleur n'ait été avantagée. Répète l'opération : les fréquences se promènent au fil des tirages, elles dérivent. Voilà le mécanisme, tout entier.
Deux conséquences immédiates :
- plus l'échantillon est petit, plus la dérive est forte. Tirer billes peut donner % de rouges ; dans un sac cent fois plus grand, aux mêmes proportions, tirer billes donnera presque toujours un résultat proche de %. Dans une petite population, les fréquences peuvent basculer en quelques générations ; dans une grande, elles ne bougent que lentement — mais elles bougent : la dérive agit à toute taille de population, seule son ampleur change ;
- la dérive peut faire disparaître un allèle, ou le rendre unique. Au gré des tirages, une fréquence peut atteindre % (l'allèle est perdu) ou % (on dit qu'il est fixé) — sans que cet allèle soit meilleur ou pire qu'un autre.
Sélection et dérive font donc la même chose — changer des fréquences alléliques — par deux voies opposées : l'une trie selon un avantage héréditaire, l'autre tire au sort. Toute la suite de la leçon t'apprend à les distinguer.
Bloc 2 sur 7 · Approfondir
Approfondir : fondateurs, goulots, et le hasard assumé
Deux situations rendent la dérive spectaculaire, parce qu'elles réduisent brutalement la taille de l'échantillon.
L'effet fondateur. Quand une petite partie d'une population fonde un nouveau groupe isolé — quelques oiseaux portés par une tempête sur une île, quelques graines transportées au loin —, ce groupe est un échantillon tiré au hasard de la population d'origine. Comme tout petit échantillon, il la représente mal : les fréquences alléliques de la population fondatrice peuvent être très différentes de celles du groupe de départ, et certains allèles peuvent manquer entièrement au voyage. Toute l'histoire génétique de la nouvelle population part de ce tirage initial.
Le goulot d'étranglement. Quand une population s'effondre — épidémie, incendie, chasse intensive — puis se reconstitue à partir des rares survivants, ces survivants jouent le même rôle qu'un groupe fondateur : un échantillon minuscule, aux fréquences remaniées par le hasard, et à la diversité appauvrie. L'exemple documenté classique est l'éléphant de mer boréal : réduit à une vingtaine d'individus par la chasse dans les années 1890, il dépasse aujourd'hui les — mais sa diversité génétique reste très faible, trace durable du goulot. Une population nombreuse peut donc être génétiquement fragile : l'effectif s'est refait, pas la diversité.
Le critère qui sépare dérive et sélection. Devant une situation, pose une seule question : la survie ou la reproduction a-t-elle dépendu d'un caractère héréditaire ? Si oui — les phalènes sombres échappent mieux aux oiseaux —, le tri est orienté : sélection. Si non — une crue emporte des têtards sans distinction, une tempête décime des criquets au hasard —, le tri est aveugle : dérive. La taille de la population ne fait pas le critère : elle règle seulement l'ampleur de la dérive.
Un allèle fixé n'est pas forcément un bon allèle. C'est le piège le plus subtil. Quand un allèle atteint % dans une petite population, l'intuition conclut qu'il devait être avantageux. Rien ne l'impose : la dérive peut fixer un allèle neutre — sans effet sur la survie — et même un allèle légèrement défavorable. Constater une fréquence finale ne prouve aucun avantage ; il faudrait montrer un lien entre l'allèle et le succès reproductif.
Pourquoi la dérive est-elle si difficile à croire ? Parce qu'elle ne « sert » à rien. Nous cherchons spontanément une raison, une fonction, un projet derrière tout changement — le même réflexe finaliste que la leçon précédente a démonté. La dérive oppose à ce réflexe un démenti radical : une part de l'évolution n'a aucune explication fonctionnelle. Elle n'optimise rien, ne répond à aucun besoin, ne va nulle part. Accepter cela, c'est comprendre que l'évolution n'est pas un perfectionnement, mais l'histoire — partiellement contingente — des fréquences alléliques. Les deux mécanismes agissent d'ailleurs en même temps sur toute population réelle : le tri orienté de la sélection se superpose en permanence au bruit de fond du hasard.
Bloc 3 sur 7 · Exemple
Exemple guidé : l'effet fondateur calculé
Une population modélisée de lézards vit sur un continent. Une tempête emporte individus sur un radeau de végétation jusqu'à une île, où ils fondent une population isolée. Un gène étudié présente deux allèles, A et a ; chaque individu porte deux exemplaires du gène. Les compositions sont les suivantes.
| Groupe | Individus AA | Individus Aa | Individus aa | Total |
|---|---|---|---|---|
| Population d'origine | ||||
| Fondateurs de l'île |
1. Compter les exemplaires du gène. Chaque individu en porte deux : la population d'origine en compte , le groupe fondateur .
2. Compter les exemplaires de l'allèle A. Un individu AA apporte deux exemplaires de A, un individu Aa en apporte un, un individu aa aucun. Dans la population d'origine :
Chez les fondateurs :
3. Calculer les deux fréquences. La fréquence de A rapporte ses exemplaires au total des exemplaires du gène. Population d'origine :
Groupe fondateur :
4. Mesurer l'écart. La fréquence de A passe de % à % : un écart de points de pourcentage entre la population d'origine et sa population fille — en une seule étape, sans qu'aucun des deux allèles n'ait procuré le moindre avantage. La tempête n'a pas choisi ses passagers d'après leur génotype : le groupe fondateur est un tirage, et ce tirage représente mal la population d'où il vient.
5. Ce qu'on peut dire — et ce qu'on ne peut pas. On peut calculer la fréquence de n'importe quelle génération écoulée, dont les effectifs sont connus. On ne peut pas prédire la fréquence de A dans dix générations sur l'île : chaque génération est un nouveau tirage, et un tirage n'a pas de résultat garanti. Tout au plus sait-on que la population insulaire, petite, dérivera vite — dans un sens imprévisible.
Bloc 4 sur 7 · Visualiser
Visualiser : des fréquences qui se promènent
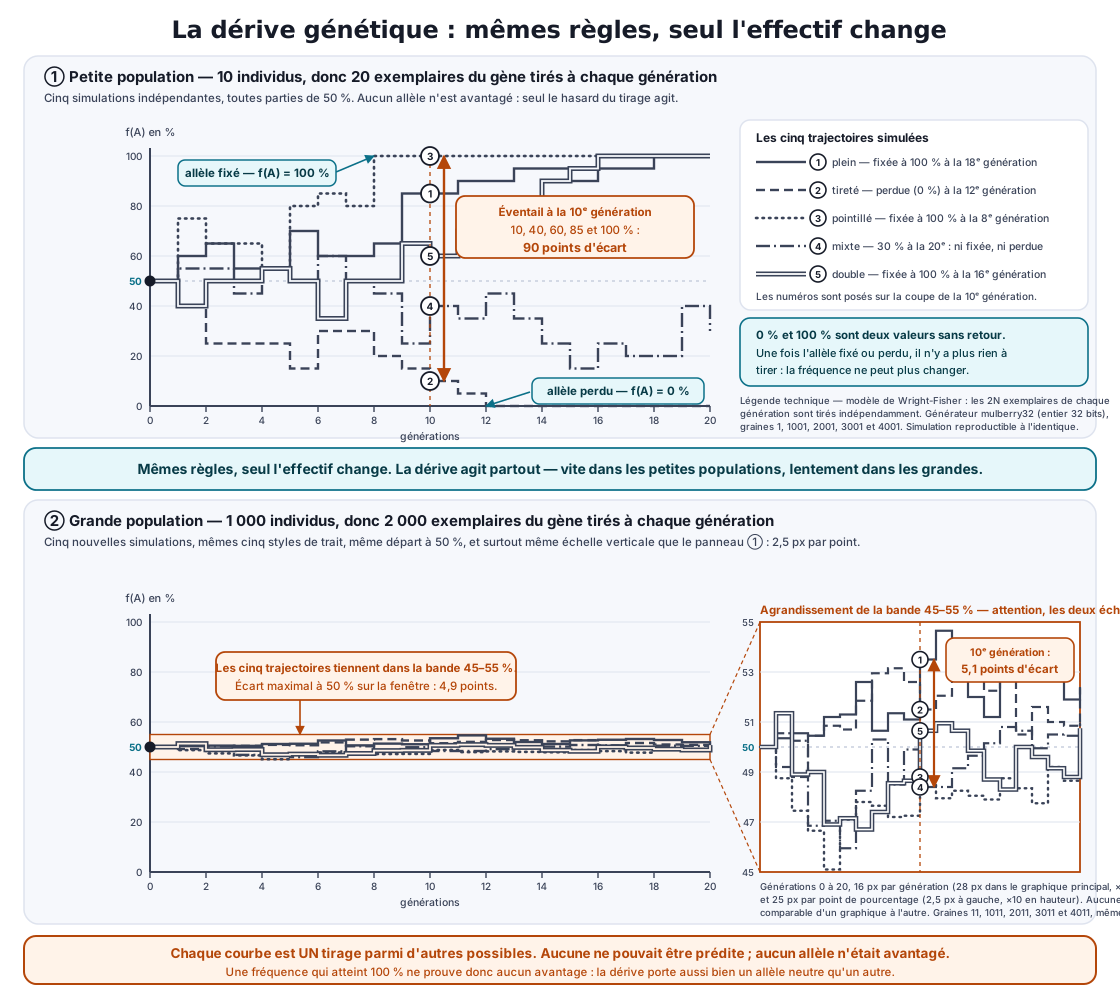
Figure (fig.biology.genetic-drift-trajectories, SVG programmatique à produire) : la modélisation par tirages aléatoires mise en image, en deux panneaux superposés partageant le même axe horizontal.
- Axes communs : en abscisse, les générations, de à ; en ordonnée, la fréquence de l'allèle A, graduée de à %, axe partant de zéro. Toutes les trajectoires démarrent à %, point de départ marqué d'un disque.
- Panneau du haut, « petite population ( individus) » : cinq trajectoires en escalier, calculées par tirages aléatoires simulés (générateur déterministe, graine affichée en légende technique), chacune dans un style de trait différent (plein, tireté, pointillé, mixte, double). Les courbes s'écartent vite et fort ; au moins une atteint % (étiquette « allèle fixé ») et une atteint % (étiquette « allèle perdu ») avant la vingtième génération, puis y reste — une note précise qu'une fréquence de ou % ne bouge plus, faute de variant à retirer.
- Panneau du bas, « grande population ( individus) » : cinq trajectoires simulées de la même façon, qui ondulent faiblement autour de % sans jamais s'en éloigner de plus de quelques points sur la fenêtre affichée.
- Un cartouche entre les panneaux : « Mêmes règles, seul l'effectif change. La dérive agit partout — vite dans les petites populations, lentement dans les grandes. »
- Un cartouche d'alerte en bas : « Chaque courbe est UN tirage parmi d'autres possibles. Aucune ne pouvait être prédite ; aucun allèle n'était avantagé. »
Ce qu'il faut lire. Compare d'abord l'éventail des courbes entre les deux panneaux : même point de départ, même durée, dispersions sans commune mesure — c'est l'effet de la taille de l'échantillon. Repère ensuite la trajectoire fixée à % : demande-toi ce qu'elle prouve sur la valeur de l'allèle A. Réponse : rien — le panneau montre justement qu'un pur tirage suffit.
Pour une lecture sans l'image : la figure superpose deux graphiques de la fréquence d'un allèle au fil de vingt générations, toutes les courbes partant de cinquante pour cent. Dans le panneau « petite population de dix individus », cinq trajectoires simulées par tirages aléatoires s'écartent rapidement, l'une atteignant cent pour cent, allèle fixé, une autre zéro pour cent, allèle perdu, puis n'en bougeant plus. Dans le panneau « grande population de mille individus », cinq trajectoires restent proches de cinquante pour cent. Deux cartouches rappellent que seul l'effectif diffère entre les panneaux, que chaque courbe n'est qu'un tirage parmi d'autres possibles et qu'aucun allèle n'était avantagé.
Bloc 5 sur 7 · Formules
La fréquence allélique et ses bornes
| Relation | Vérification sur l'exemple | Domaine de validité |
|---|---|---|
| fondateurs : % | gène à deux exemplaires par individu ( est l'effectif du groupe) | |
| % | % | gène à deux allèles exactement |
| petite population fluctuations fortes | écart de points pour fondateurs | comparaison qualitative — aucune formule de seconde ne chiffre l'ampleur des fluctuations |
Unités. Les fréquences alléliques s'expriment en pourcentage (ou en proportion entre et ) ; leurs écarts en points de pourcentage. Les effectifs et les nombres d'exemplaires sont des dénombrements sans unité.
Domaine de validité, essentiel ici. La formule compte des exemplaires du gène, pas des individus : ne divise jamais par , toujours par . Elle vaut pour une génération dont les effectifs sont écrits — jamais pour une génération future : la dérive étant un tirage, aucune fréquence à venir ne se calcule. Enfin, la relation % suppose deux allèles exactement ; avec trois allèles ou plus, c'est la somme de toutes les fréquences qui vaut %.
Vocabulaire. Dérive génétique : évolution des fréquences alléliques sous le seul effet du hasard de l'échantillonnage. Effet fondateur : dérive causée par la fondation d'une population par un petit groupe. Goulot d'étranglement : dérive causée par l'effondrement puis la reconstitution d'une population. Fixation : fréquence de % atteinte par un allèle.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Confondre dérive et sélection. Les deux modifient les fréquences alléliques — ce n'est donc pas là qu'on les distingue. Le critère : la survie ou la reproduction a-t-elle dépendu d'un caractère héréditaire ? Oui : sélection (tri orienté). Non : dérive (tirage aveugle). Une crue qui emporte des têtards sans distinction, c'est la dérive ; des lièvres au pelage épais qui survivent aux hivers rudes, c'est la sélection.
- Croire que la dérive n'agit pas dans les grandes populations. Le tirage a lieu à chaque génération, quel que soit l'effectif : la dérive agit partout. Ce qui change avec la taille, c'est l'ampleur des fluctuations — fortes dans un petit groupe, faibles dans un grand. « Plus lente » ne veut pas dire « absente ».
- Penser qu'un allèle fixé est forcément avantageux. La dérive peut porter un allèle neutre, voire légèrement défavorable, jusqu'à %. Une fréquence finale ne prouve aucun avantage : seul un lien démontré entre l'allèle et le succès reproductif le prouverait.
- Chercher à prédire les fréquences futures. « Quelle sera la fréquence dans dix générations ? » n'a pas de réponse : chaque génération est un nouveau tirage. On calcule les fréquences de générations écoulées, aux effectifs connus — jamais l'avenir.
- Diviser par l'effectif au lieu du nombre d'exemplaires. Chaque individu porte deux exemplaires du gène : un groupe de individus en porte . Diviser par au lieu de double la fréquence — c'est l'erreur de calcul type du chapitre.
- Croire que le hasard « finit par s'équilibrer ». Les tirages n'ont pas de mémoire : rien ne ramène une fréquence vers sa valeur de départ, et un allèle perdu l'est définitivement. Attendre un retour à l'équilibre, c'est prêter au hasard une intention qu'il n'a pas.
- Prêter malgré tout une fonction à la dérive. « À quoi sert la dérive ? » — à rien, et c'est le point. Elle n'optimise rien, ne répond à aucun besoin. Une part de l'évolution est sans explication fonctionnelle : chercher un « pour quoi » à la dérive, c'est retomber dans le finalisme.
Bloc 7 sur 7 · Vérifier
Vérifier : calculer une fréquence allélique
À quoi t'attendre. Le modèle d'entraînement associé à cette leçon décrit un épisode de dérive — colonisation d'une île, groupe isolé par une route, survivants d'un assèchement — avec les compositions génotypiques écrites (AA, Aa, aa), ou bien un tableau de tirages génération par génération. Il demande une fréquence allélique en pourcentage, ou un écart en points entre deux groupes. La réponse est un calcul exact sur les effectifs affichés — jamais une prédiction.
Énoncé type — entièrement corrigé.
Une mare abrite une population modélisée de épinoches. Après un assèchement, seuls individus survivent et repeuplent la mare. Un gène étudié présente deux allèles, A et a ; chaque individu porte deux exemplaires du gène.
Composition de la population d'origine : individus AA, individus Aa, individus aa.
Composition du groupe des survivants : individus AA, individus Aa, individus aa.
Quelle est la fréquence de l'allèle A dans le groupe des survivants, en pourcentage ?
Correction.
Le groupe des survivants compte individus, donc exemplaires du gène.
Exemplaires de A : (deux par individu AA, un par individu Aa).
Fréquence de A chez les survivants :
Dans la population d'origine, cette fréquence valait % : l'assèchement — qui n'a pas choisi ses survivants d'après leur génotype — a fait chuter la fréquence de points. C'est un goulot d'étranglement, une forme de dérive génétique : aucun des deux allèles n'était avantagé.
Auto-contrôle : le dénominateur est toujours le double de l'effectif du groupe (deux exemplaires du gène par individu), et ta fréquence doit rester entre et %. Vérifie enfin la cohérence : doit valoir exactement % — ici .
Sources
- BO spécial n°1 du 22 janvier 2019 — programme de sciences de la vie et de la Terre de seconde générale et technologique, thème « La Terre, la vie et l'organisation du vivant » : biodiversité et évolution, dérive génétique
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitre sur l'évolution des populations : dérive génétique, effet fondateur, goulot d'étranglement
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie