Biologie · Licence 1 · 17 min de lecture
La PCR : copier des millions de fois une région choisie
Reproduire la réplication de l'ADN in vitro, mais sur une région choisie. Un cycle enchaîne trois températures : dénaturation, qui sépare les deux brins ; hybridation, où deux amorces courtes se fixent chacune sur un brin en encadrant la région d'intérêt ; élongation, où une ADN polymérase thermostable synthétise le brin complémentaire à partir de chaque amorce. Ce sont les AMORCES, et elles seules, qui choisissent la région amplifiée : le reste du génome est présent mais n'est pas recopié de façon exploitable. Le nombre de copies double à chaque cycle tant que les réactifs sont en excès, d'où une croissance géométrique de raison 2 ; il faut cependant trois cycles pour que la première molécule de longueur exactement définie par les deux amorces apparaisse, les produits des premiers cycles ayant une extrémité libre. La croissance finit par s'infléchir puis atteindre un plateau, quand les amorces ou les nucléotides s'épuisent et que les produits se réhybrident entre eux plus vite que les amorces ne les trouvent : conclure sur une quantité initiale à partir du produit final d'une PCR classique est donc un contresens. La température d'hybridation se choisit à partir de la température de fusion des amorces : trop basse, elles se fixent sur des sites approximatifs et l'on amplifie autre chose ; trop haute, elles ne se fixent plus du tout.
Chapitre du programme : Biologie moléculaire et génétique
Bloc 1 sur 7 · Comprendre
Comprendre : la réplication, sortie de la cellule
Dans une cellule, la réplication copie tout le génome, une fois par cycle cellulaire, avec une machinerie d'une vingtaine de protéines. La PCR (polymerase chain reaction, réaction en chaîne par polymérase) garde l'essentiel du principe — un brin sert de matrice, une amorce est allongée par une polymérase — et change trois choses : elle se fait dans un tube, elle copie une seule région, et elle recommence des dizaines de fois en quelques heures. Le résultat : à partir de quelques molécules, des milliards de copies d'un fragment choisi.
Ce qu'il y a dans le tube. L'ADN à analyser (la matrice, qui peut être tout un génome) ; deux amorces, courts oligonucléotides simple brin d'une vingtaine de nucléotides, synthétisés pour être complémentaires des deux extrémités de la région d'intérêt — l'une sur un brin, l'autre sur l'autre — ; une ADN polymérase thermostable, le plus souvent la Taq polymérase, isolée de Thermus aquaticus, bactérie des sources chaudes ; les quatre désoxyribonucléotides ; un tampon avec des ions , cofacteur de l'enzyme.
Un cycle, trois températures.
- Dénaturation, vers °C : les liaisons hydrogène entre les deux brins se rompent, l'ADN devient simple brin. Les liaisons covalentes du squelette, elles, tiennent.
- Hybridation (ou appariement), le plus souvent entre et °C selon les amorces : en refroidissant, les amorces, très nombreuses et très courtes, trouvent leur séquence complémentaire avant que les longs brins ne se réassocient entre eux. Chaque amorce se fixe sur un brin, en bordure de la région à copier.
- Élongation, vers °C pour la Taq : la polymérase allonge chaque amorce par son extrémité , nucléotide après nucléotide, en recopiant le brin matrice — dans le sens , comme dans la cellule.
Puis on recommence. Les produits d'un cycle sont les matrices du suivant : c'est la chaîne.
Ce sont les amorces qui choisissent. La polymérase ne sait pas où est le gène ; elle allonge ce qui est amorcé. Le reste du génome est présent dans le tube, dénaturé et réassocié à chaque cycle, mais rien ne l'amorce : il n'est pas recopié de façon exploitable. Choisir une région, c'est dessiner deux amorces qui l'encadrent, l'une orientée vers l'autre. Une amorce est allongée ; une sonde, elle, ne fait que reconnaître une séquence pour la révéler — ce n'est pas la même chose.
Pourquoi une enzyme thermostable. La première dénaturation, à °C, détruirait une polymérase ordinaire ; il faudrait en rajouter à chaque cycle — c'est ainsi que Mullis a d'abord procédé. L'enzyme d'une bactérie thermophile survit aux dizaines de passages à °C : c'est elle qui a rendu la méthode automatisable.
Le compte, en première approximation. Si chaque molécule double brin donne deux molécules à chaque cycle, il y en a après cycles par molécule de départ : une suite géométrique de raison . Trente cycles : . Ce compte est presque juste — presque : la section suivante dit ce qu'il oublie.
Bloc 2 sur 7 · Approfondir
Approfondir : les vrais produits, le plateau, la spécificité
Les produits des premiers cycles ne sont pas de la bonne longueur. Au premier cycle, chaque amorce est allongée sur un brin génomique : la polymérase part de l'amorce et continue jusqu'au bout de la matrice, bien au-delà de l'autre amorce. Les deux produits ont donc une extrémité définie par une amorce et l'autre libre, indéfinie. Au deuxième cycle, ces brins longs servent à leur tour de matrice : le brin synthétisé sur eux part de la seconde amorce et s'arrête là où la matrice s'arrête — c'est-à-dire à la première amorce. Il a exactement la longueur voulue, mais il est apparié à un brin long. Ce n'est qu'au troisième cycle qu'un brin exact sert de matrice à un autre brin exact : apparaissent alors les premières molécules double brin dont les deux extrémités sont fixées par les deux amorces — deux par molécule de départ.
Le compte précis, obtenu en suivant chaque brin, est : après cycles, molécules double brin par molécule initiale, dont de longueur exacte. Cycle par cycle : , , , , , , … Les molécules « longues » sont celles qui contiennent encore un brin issu directement du génome ou du premier cycle : leur nombre croît linéairement, celui des molécules exactes géométriquement. Après trente cycles, molécules longues pour un milliard d'exactes : la fraction imprécise est négligeable, mais aux premiers cycles elle est tout.
Le plateau. La raison suppose que chaque brin trouve une amorce, des nucléotides et une enzyme disponibles. Trois choses cassent l'exponentielle :
- les amorces s'épuisent : pmol d'amorce, une quantité usuelle, font molécules ; à partir d'une seule copie, les dépasse vers — et bien plus tôt si l'on part de milliers de copies ;
- les produits se réhybrident entre eux : quand ils sont abondants, deux brins complémentaires de produit se retrouvent plus vite qu'une amorce ne trouve son site ; ces molécules refermées ne sont pas copiées ;
- l'enzyme est en quantité finie et perd de l'activité au fil des chocs thermiques.
La courbe du nombre de copies en fonction du cycle est donc une exponentielle qui s'infléchit puis atteint un plateau, à peu près au même niveau quel que soit le nombre de molécules de départ. Conséquence, capitale : la quantité de produit en fin de PCR classique ne dit rien de la quantité d'ADN initiale. Deux échantillons qui partaient de et de copies donnent, après cycles, à peu près la même bande. Pour quantifier, on regarde la phase exponentielle : c'est le principe de la PCR quantitative, qui suit la fluorescence à chaque cycle et lit le cycle seuil auquel le signal dépasse un niveau fixé — mille fois plus de copies au départ, c'est un seuil atteint environ cycles plus tôt ().
L'efficacité réelle. Même hors plateau, tous les brins ne sont pas copiés à chaque cycle : la raison effective vaut avec . Pour , trente cycles donnent copies au lieu de — près de cinq fois moins. Une petite différence d'efficacité, cycle après cycle, devient un grand écart : encore une raison de ne pas lire une quantité initiale sur un produit final.
Choisir la température d'hybridation. Une amorce s'apparie de façon stable en dessous de sa température de fusion , celle où la moitié des duplex sont dissociés ; croît avec la longueur de l'amorce et avec sa proportion de paires C–G, tenues par trois liaisons hydrogène au lieu de deux. On hybride quelques degrés sous :
- trop bas, l'amorce tolère des mésappariements et se fixe sur des sites approximatifs ailleurs dans le génome : la polymérase les allonge aussi, et l'on amplifie autre chose — des bandes parasites ;
- trop haut, l'amorce ne se fixe plus du tout : rien n'est amplifié. Une hybridation plus basse n'est donc pas « plus sûre » ; elle est moins spécifique. Les deux amorces doivent avoir des voisines, pour qu'une seule température convienne aux deux.
Ce qu'on fait ensuite. Le produit est vérifié par sa taille (électrophorèse : une bande à la longueur attendue entre les deux amorces), puis séquencé, cloné, ou comparé. La PCR ne dit pas ce qu'il y a dans une séquence ; elle en fait assez d'exemplaires pour qu'on puisse le lire.
Bloc 3 sur 7 · Exemple
Exemple guidé : combien de copies, et lesquelles
Énoncé. On amplifie par PCR une région de paires de bases à partir d'un échantillon qui contient une seule molécule d'ADN génomique double brin portant cette région. On réalise cycles ; on suppose d'abord que chaque brin est copié à chaque cycle.
- Combien de molécules double brin de la région obtient-on ? Combien ont exactement la longueur définie par les deux amorces ?
- À partir de quel cycle la première molécule de longueur exacte apparaît-elle ?
- Le tube contient pmol de chaque amorce. Le plateau est-il atteint avec une copie de départ ? Et si l'échantillon contenait copies ?
- Si l'efficacité réelle n'est que de % par cycle, combien de copies obtient-on ? Que conclure pour la quantification ?
---
1. Le compte. Une molécule double brin donne molécules par cycle : après cycles, molécules. Parmi elles, les molécules de longueur exacte sont au nombre de : toutes, sauf .
Environ molécules, dont seulement dépassent la région (elles contiennent un brin d'origine ou du premier cycle).
2. Le premier produit exact. Cycle 1 : deux brins à une extrémité libre. Cycle 2 : deux brins de longueur exacte, chacun apparié à un brin long — aucune molécule double brin entièrement exacte. Cycle 3 : les brins exacts servent de matrice, et l'on obtient molécules double brin exactes.
Au troisième cycle. Aux deux premiers, le compte est juste, mais aucune molécule n'a encore la bonne longueur.
3. Le plateau. pmol d'amorce représentent molécules. Chaque molécule de produit consomme une amorce de chaque sorte ; avec une copie de départ, n'entame que le dix-millième de la réserve : les amorces ne limitent pas — le plateau, s'il survient, vient de la réhybridation des produits ou de l'enzyme. Avec copies, le compte idéal donnerait , plus que les amorces disponibles : le plateau est certainement atteint avant le trentième cycle, vers par copie, soit .
Une copie : pas de plateau par les amorces. copies : plateau avant la fin ; les deux tubes finissent avec des quantités voisines.
4. Efficacité. Raison : , contre — fois moins. Une efficacité connue à % près laisse le résultat final incertain d'un facteur cinq.
Le nombre final de copies n'est pas une mesure de la quantité initiale : ni le plateau ni l'efficacité ne sont contrôlés. Seule la phase exponentielle, suivie cycle par cycle, permet de quantifier.
Lecture. Le du cours est un maximum : vrai pour le nombre de molécules, faux pour leur longueur aux premiers cycles, faux pour tout quand les réactifs manquent. La PCR est un amplificateur superbe et un mauvais instrument de mesure — sauf si l'on mesure pendant qu'elle amplifie.
Bloc 4 sur 7 · Visualiser
Visualiser : la complémentarité, ce que l'amorce exploite
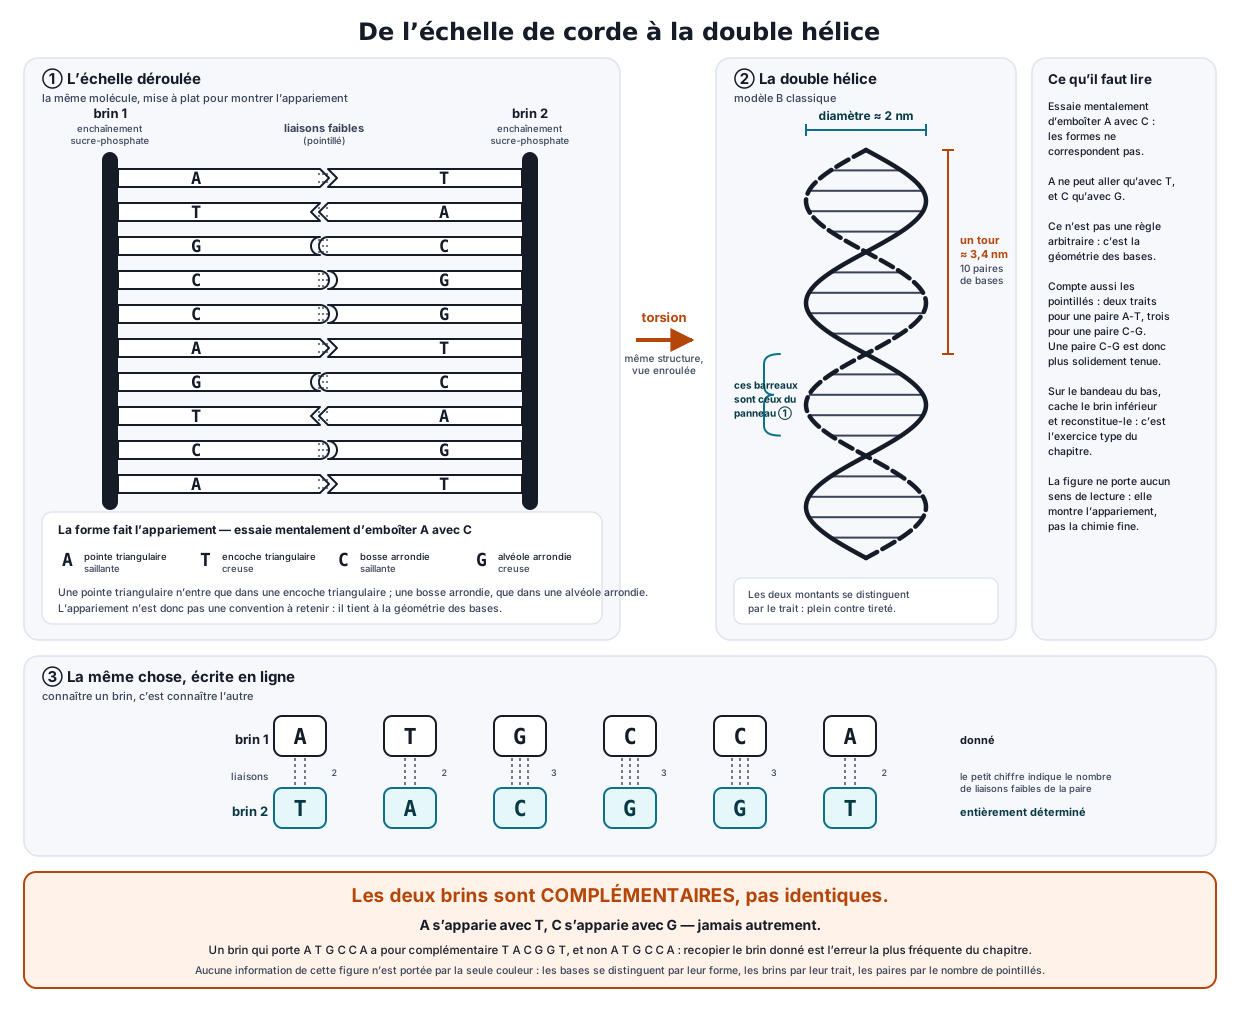
Figure (fig.biology.dna-double-helix, figure programmatique de la leçon de première sur la structure de l'ADN, réutilisée ici parce que chaque étape de la PCR repose sur ce qu'elle montre) : trois parties.
- Premier panneau, l'échelle déroulée. Deux montants verticaux légendés brin un et brin deux, « enchaînement sucre-phosphate », et dix barreaux coupés en leur milieu. Les quatre bases se distinguent par la forme de leur extrémité, non par une couleur : pointe triangulaire (A) dans encoche triangulaire (T), bosse arrondie (C) dans alvéole arrondie (G) — une pointe n'entre pas dans une alvéole. Les liaisons faibles sont figurées en pointillés : deux pour A–T, trois pour C–G. La séquence dessinée est ATGCCAGTCA face à TACGGTCAGT. Ce qu'il faut y lire pour cette leçon : une amorce est un morceau de « brin deux » fabriqué en laboratoire ; l'hybridation, c'est cet emboîtement, retrouvé à la bonne place parce qu'une vingtaine de formes consécutives ne coïncident qu'à un endroit du génome. Et la dénaturation à °C rompt les pointillés, jamais les montants.
- Second panneau, la double hélice, calculée à l'échelle ( nm de diamètre, nm par tour, dix paires par tour). C'est cette torsion que la chaleur défait, et que la polymérase reconstruit en allongeant l'amorce le long du brin matrice.
- Bandeau du bas : ATGCCA au-dessus de TACGGT, et le cartouche : les deux brins sont complémentaires et non identiques ; recopier le brin donné au lieu de le complémenter est l'erreur la plus fréquente du chapitre. Pour la PCR, c'est l'erreur de conception d'amorce : une amorce est complémentaire du brin sur lequel elle se fixe, donc de même séquence que l'autre brin. Et le nombre de traits — trois pour C–G — est la raison pour laquelle une amorce riche en C et G a une température de fusion plus élevée.
Ce que la figure ne montre pas, et qu'il faut imaginer : le sens de lecture des brins (aucune extrémité ou n'est indiquée, la figure le dit elle-même), alors que la polymérase n'allonge une amorce que par son extrémité , ce qui fixe l'orientation des deux amorces l'une vers l'autre ; les amorces, la polymérase et les nucléotides libres ; les cycles de température ; et la longueur réelle d'une région amplifiée — des centaines de paires de bases, quand l'échelle dessinée en compte dix.
Bloc 5 sur 7 · Formules
Ce qu'il faut retenir
| Étape | Température usuelle | Ce qui se passe | Ce qu'il faut |
|---|---|---|---|
| Dénaturation | °C | rupture des liaisons hydrogène, brins séparés | une polymérase qui y survit |
| Hybridation | quelques degrés sous | les amorces s'apparient à leurs sites | des amorces de voisines |
| Élongation | °C (Taq) | la polymérase allonge chaque amorce en | nucléotides, |
Trois phrases. Les amorces choisissent la région, la polymérase ne choisit rien. Le compte est un maximum : longueur inexacte aux premiers cycles, plateau à la fin. La quantité finale ne mesure pas la quantité initiale ; la phase exponentielle, si.
Ce qui n'est pas dans cette leçon. La PCR quantitative en détail, la RT-PCR, la conception chiffrée des amorces, l'électrophorèse, le séquençage.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Croire que la PCR amplifie tout l'ADN présent. Seule la région encadrée par les deux amorces est recopiée de façon exploitable ; le reste du génome est dans le tube, mais rien ne l'amorce.
- Compter molécules de bonne longueur dès le premier cycle. Les premières molécules exactes apparaissent au cycle ; après cycles il y en a , pas . Aux premiers cycles, la différence est tout.
- Prolonger la croissance géométrique jusqu'au dernier cycle. Amorces, nucléotides, enzyme et réhybridation des produits imposent un plateau. La courbe n'est exponentielle qu'au début.
- Déduire la quantité initiale du produit final. Le plateau et l'efficacité effacent cette information ; deux échantillons très différents finissent semblables. Seul un suivi cycle par cycle (cycle seuil) quantifie.
- Confondre amorce et sonde. L'amorce est allongée par la polymérase ; la sonde ne fait que reconnaître une séquence pour la révéler.
- Croire qu'une hybridation plus basse est plus sûre. Elle tolère les mésappariements et amplifie des sites parasites. La bonne température est quelques degrés sous , ni plus bas ni plus haut.
- Oublier que la polymérase doit être thermostable. Une enzyme ordinaire est détruite dès la première dénaturation à °C ; c'est la Taq qui a rendu les cycles automatiques.
- Dessiner une amorce identique au brin qu'elle doit reconnaître. Elle en est complémentaire (et de même séquence que l'autre brin) ; et elle doit être orientée pour que son extrémité pointe vers l'autre amorce.
- Croire que la dénaturation « casse » l'ADN. Elle rompt les liaisons hydrogène entre les brins ; les liaisons covalentes du squelette sucre-phosphate restent intactes, et les brins se réassocient en refroidissant.
Bloc 7 sur 7 · Vérifier
Vérifier : copies, cycles et molécules exactes
Le modèle d'entraînement. L'exercice associé à cette leçon porte sur la PCR elle-même. Il demande, selon la variante, le nombre de molécules de la région ciblée après cycles à réactifs en excès (), le nombre de cycles nécessaire pour atteindre une quantité donnée, le nombre de molécules bornées par les deux amorces après cycles à partir d'une seule matrice (, les premières au cycle 3), leur proportion, ou le nombre de copies quand chaque cycle ne multiplie que par avec une efficacité . Le compte n'est pas admis : il est retrouvé par une simulation brin par brin, et le corrigé écrit le raisonnement. L'arithmétique semi-conservative reste servie par le modèle de première (Meselson et Stahl).
Énoncé type. Une PCR part de molécules d'ADN double brin portant la région ciblée ; chaque cycle double le nombre de molécules tant que amorces et nucléotides sont en excès.
- Combien de molécules obtient-on après cycles ?
- Combien de cycles faut-il, au minimum, pour dépasser molécules ?
- À partir d'une seule molécule matrice bien plus longue que la cible, combien de molécules double brin sont bornées par les deux amorces après cycles, et quelle proportion cela représente-t-il ?
Corrigé complet.
1. Trente doublements. .
molécules.
Ce compte suppose les réactifs en excès jusqu'au bout ; en pratique le plateau arrive avant, et la quantité finale ne dit plus rien de .
2. Nombre de cycles. On cherche le plus petit entier tel que , soit : .
cycles ( ; avec cycles, ne suffit pas).
3. Molécules exactes. Les brins d'origine persistent ; à chaque cycle, chacun est copié en un brin semi-borné (une extrémité fixée par l'amorce, l'autre libre), soit brins semi-bornés après cycles ; tout brin copié sur un brin semi-borné ou borné est borné aux deux extrémités. Une molécule est exacte quand ses deux brins sont bornés : ce sont les copies des brins déjà bornés au cycle précédent, au nombre de .
Après cycles : molécules exactes sur , soit %.
Les premières apparaissent au cycle () ; ensuite les molécules trop longues deviennent vite négligeables.
Réponses : ; cycles ; molécules exactes, %.
Auto-contrôle. Ai-je multiplié par élevé au nombre de cycles, et non par ? Pour le nombre de cycles, ai-je arrondi à l'entier supérieur puis vérifié ? Ai-je distingué brins d'origine, brins semi-bornés et brins bornés avant de compter les molécules exactes ? Ai-je rappelé que le plateau efface l'information sur ?
L’exercice interactif de cette leçon attend la fin de sa relecture scientifique. L’énoncé type ci-dessus est complet : il se travaille tel quel.
Sources
- K. Mullis, F. Faloona, « Specific synthesis of DNA in vitro via a polymerase-catalyzed chain reaction », Methods in Enzymology, vol. 155, 1987, p. 335-350
- A. Griffiths et al., Introduction à l'analyse génétique, De Boeck
- B. Alberts et al., Biologie moléculaire de la cellule, Lavoisier
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- Le potentiel d'action : un message tout ou rien
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif