Biologie · Terminale · 19 min de lecture
Le potentiel d'action : un message tout ou rien
Potentiel de repos, potentiel d'action (loi du tout ou rien, codage en fréquence), propagation, synapse chimique et neurotransmetteurs, réflexe myotatique.
Chapitre du programme : Corps humain et santé
Bloc 1 sur 7 · Comprendre
Comprendre : de quoi est fait un message nerveux
En quatrième, tu as appris qu'un stimulus est capté par un récepteur, qu'un message nerveux part vers un centre nerveux, et qu'il repart vers un organe effecteur. Le message circulait — mais on ne disait pas ce qu'il est. C'est la question de cette leçon, et sa réponse tient en une phrase : le message nerveux est une suite de brèves variations du potentiel électrique de la membrane du neurone.
Une membrane électriquement chargée : le potentiel de repos. Si l'on place une microélectrode à l'intérieur d'un neurone au repos et une autre à l'extérieur, on mesure une différence de potentiel : l'intérieur est négatif par rapport à l'extérieur, d'environ mV. Cette valeur porte un nom, le potentiel de repos. Elle existe parce que les ions ne sont pas répartis également des deux côtés de la membrane, et parce que la cellule dépense de l'énergie en permanence pour maintenir cette inégalité. Retiens l'essentiel : un neurone au repos n'est pas un neurone neutre, c'est un neurone polarisé, prêt à réagir.
Ce qui se passe quand on stimule. Une stimulation faible déforme localement ce potentiel : la membrane se dépolarise un peu, c'est-à-dire que le potentiel remonte vers zéro. Si la stimulation reste faible, cette dépolarisation s'éteint sur place et rien ne part. Mais si elle atteint une valeur particulière, le seuil, la membrane bascule : des canaux ioniques sensibles à la tension s'ouvrent, le potentiel s'inverse brutalement jusqu'à environ mV, puis revient à sa valeur de repos. Cette variation brève — de l'ordre de la milliseconde — est le potentiel d'action.
La loi du tout ou rien. Ou bien le seuil est atteint et le potentiel d'action se déclenche entier, toujours avec la même amplitude ; ou bien il n'est pas atteint et il ne se passe rien. Il n'existe pas de demi-potentiel d'action, pas plus qu'il n'existe de demi-déclenchement d'un appareil photo.
Alors comment le neurone dit-il « fort » ou « faible » ? Puisque tous les potentiels d'action d'une fibre ont la même amplitude, l'intensité du stimulus ne peut pas être écrite dans leur taille. Elle est écrite dans leur nombre par seconde, c'est-à-dire dans leur fréquence : plus la stimulation est intense, plus les potentiels d'action se succèdent rapidement. C'est un codage en fréquence, exprimé en hertz. Une seconde information s'y ajoute à l'échelle du nerf entier : plus le stimulus est intense, plus il recrute de fibres — mais chacune, prise isolément, reste fidèle au tout ou rien.
La propagation. Un potentiel d'action né en un point provoque la dépolarisation du point voisin, qui atteint son seuil à son tour, et ainsi de suite : le message se régénère de proche en proche. Conséquence importante : il arrive au bout de la fibre avec exactement la même amplitude qu'au départ, contrairement à un signal qui s'affaiblirait dans un fil. Ce qui change d'une fibre à l'autre, c'est la vitesse : une fibre entourée d'une gaine de myéline conduit de à m/s environ, une fibre sans myéline seulement de à m/s. La myéline force le message à sauter d'un nœud à l'autre, ce qui l'accélère beaucoup.
La synapse : le message change de nature. Au bout de la fibre, la propagation électrique s'arrête net : les deux neurones ne se touchent pas, une fente synaptique les sépare. L'arrivée du potentiel d'action déclenche alors la libération, par exocytose, de molécules stockées dans des vésicules, les neurotransmetteurs. Elles traversent la fente, se fixent sur des récepteurs de la membrane du neurone suivant, et y provoquent une dépolarisation. Si celle-ci atteint le seuil, un nouveau potentiel d'action naît, identique aux précédents. Le message est donc électrique dans la fibre, chimique dans la fente, puis de nouveau électrique : c'est ce relais qui rend la transmission à sens unique, et qui coûte un petit temps, le délai synaptique, de l'ordre de à ms.
Le réflexe myotatique, le circuit le plus court. Quand le médecin frappe sous ta rotule, le muscle de la cuisse est brièvement étiré. Des récepteurs logés dans ce muscle, les fuseaux neuromusculaires, envoient un message par un neurone sensitif jusqu'à la moelle épinière. Là, ce neurone sensitif fait synapse directement avec le motoneurone qui commande le même muscle, lequel se contracte. Une seule synapse : le réflexe est monosynaptique, il ne passe pas par l'encéphale, et c'est pourquoi il est à la fois très rapide et involontaire. L'encéphale est informé, mais après coup — il ne décide pas.
Bloc 2 sur 7 · Approfondir
Approfondir : mesurer un message nerveux
Étudier un message nerveux, c'est mesurer trois choses : combien de potentiels d'action par seconde, quelle amplitude, et combien de temps pour aller d'un point à un autre.
Compter une fréquence. On enregistre l'activité d'une fibre pendant une fenêtre de durée connue et l'on compte les potentiels d'action. La fréquence est le nombre de potentiels d'action par seconde. Il faut donc convertir la fenêtre en secondes avant de diviser : potentiels d'action en ms font
Les valeurs rencontrées vont de quelques hertz à quelques centaines de hertz. Cette limite haute n'est pas arbitraire : juste après un potentiel d'action, la membrane traverse une période réfractaire de l'ordre de la milliseconde, pendant laquelle elle ne peut pas en produire un second. Aucune fibre ne peut donc dépasser quelques centaines de potentiels d'action par seconde, quelle que soit la violence du stimulus.
Lire une amplitude. L'amplitude d'un potentiel d'action est l'écart entre la valeur de repos et le sommet du pic. Attention aux signes : le repos est négatif et le pic positif, donc l'écart est plus grand que chacune des deux valeurs prise seule. Avec un repos à mV et un pic à mV :
Cette amplitude est la même pour tous les potentiels d'action d'une fibre donnée, faible ou forte stimulation : c'est la traduction chiffrée de la loi du tout ou rien.
Calculer une durée de propagation. Le message avance à vitesse constante le long d'une fibre. La durée de parcours est donc le quotient de la distance par la vitesse :
Le résultat sort en secondes ; on le convertit en millisecondes, unité naturelle du système nerveux, en multipliant par . Un même trajet de m dure environ ms le long d'une fibre myélinisée à m/s, et s le long d'une fibre sans myéline à m/s : le rapport entre les deux se voit à l'œil nu, et c'est l'intérêt de la myéline.
Additionner les étapes d'un réflexe. La latence d'un réflexe myotatique se décompose sans mystère : le message parcourt la distance le long du neurone sensitif, franchit une synapse, puis parcourt la distance le long du motoneurone. Si les deux fibres conduisent à la même vitesse et si le délai synaptique vaut :
On obtient quelques dizaines de millisecondes — d'où la sensation d'immédiateté. Un mouvement volontaire, qui passe par l'encéphale et traverse plusieurs synapses, demande plusieurs centaines de millisecondes.
Ce que la terminale ne fait pas. On décrit les canaux ioniques et l'inégalité de répartition des ions, on ne les met pas en équation : le calcul du potentiel de membrane à partir des concentrations ioniques et la modélisation des courants qui engendrent le potentiel d'action appartiennent à l'enseignement supérieur. Ici, les tracés se lisent et les durées se calculent avec une division.
Bloc 3 sur 7 · Exemple
Exemple guidé : la latence d'un réflexe myotatique
Énoncé. Lors d'un réflexe myotatique, le message nerveux né dans le fuseau neuromusculaire d'un muscle de la jambe parcourt m le long du neurone sensitif jusqu'à la moelle épinière, franchit une synapse dont le délai est ms, puis parcourt m le long du motoneurone jusqu'au muscle. Les deux fibres sont myélinisées et conduisent à la même vitesse m/s.
- Calculer, en millisecondes, la durée totale entre l'étirement du muscle et l'arrivée du message au muscle.
- Que deviendrait cette durée si les mêmes fibres, dépourvues de myéline, conduisaient à m/s ?
- La stimulation est deux fois plus forte. Qu'est-ce qui change dans l'enregistrement fait sur le neurone sensitif ?
---
1. La latence. Le trajet se fait à la même vitesse sur les deux fibres : on peut additionner les distances avant de diviser.
soit ms de conduction. Il reste à ajouter le franchissement de la synapse, déjà exprimé en millisecondes :
Remarque utile : la synapse ne coûte presque rien ici — moins d'une milliseconde sur près de trente-cinq. C'est la longueur du trajet, pas le relais chimique, qui fait la latence de ce réflexe.
2. Sans myéline. Même trajet, vitesse cinquante fois plus faible :
auxquelles s'ajoute le même délai synaptique de ms, négligeable devant s. La latence passe donc de quelques centièmes de seconde à près de deux secondes. Un réflexe de protection aussi lent ne protégerait plus de grand-chose : la gaine de myéline n'est pas un détail d'anatomie, c'est ce qui rend le réflexe utile.
3. Une stimulation plus forte. L'amplitude des potentiels d'action ne bouge pas : elle vaut toujours mV si le repos est à mV et le pic à mV. Leur vitesse de propagation ne bouge pas non plus : elle dépend du diamètre de la fibre et de sa gaine, pas du stimulus. Ce qui change, c'est le nombre de potentiels d'action par seconde : la fréquence augmente. Sur l'enregistrement, on verrait exactement les mêmes pics, simplement plus serrés.
Contrôle. Deux vérifications avant de rendre. La durée de conduction est-elle cohérente avec l'ordre de grandeur annoncé — quelques dizaines de millisecondes pour un réflexe, pas quelques microsecondes ni quelques minutes ? Et le délai synaptique a-t-il été ajouté une seule fois, puisque le réflexe myotatique ne compte qu'une seule synapse ?
Bloc 4 sur 7 · Visualiser
Visualiser : l'enregistrement, la fibre et la synapse
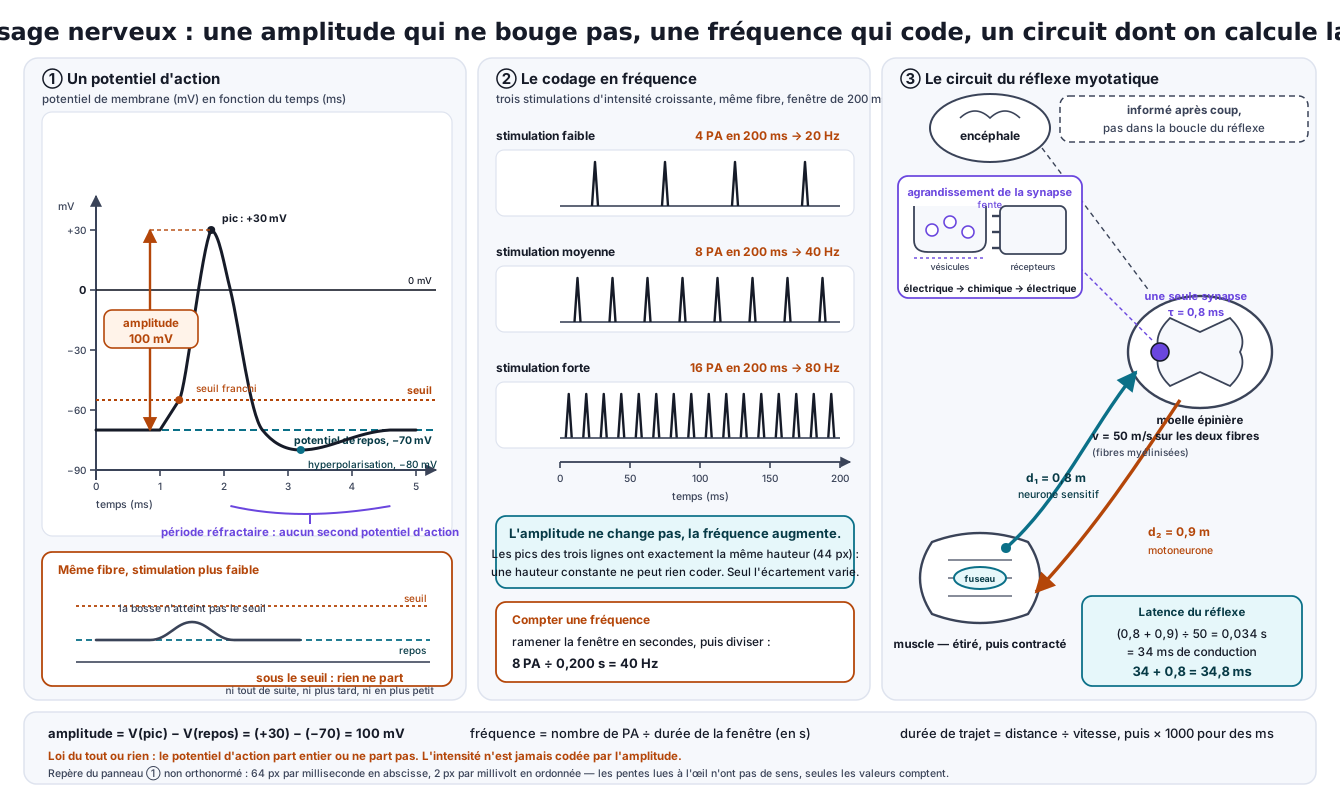
Figure (fig.biology.action-potential-coding, image vectorielle programmatique à produire) : trois panneaux, du signal isolé au circuit complet.
- Panneau gauche — un potentiel d'action. Axe horizontal : le temps, en millisecondes, gradué de à . Axe vertical : le potentiel de membrane, en millivolts, gradué de à , avec le zéro clairement marqué. Une ligne horizontale en pointillé à mV légendée « potentiel de repos », une autre au niveau du seuil légendée « seuil ». Le tracé part du repos, monte brutalement jusqu'à mV, redescend, passe brièvement sous la valeur de repos, puis y revient. Une double flèche verticale entre et mV porte « amplitude mV ». Une accolade sous la fin du tracé indique « période réfractaire ». À côté, un tracé plus pâle d'une stimulation sous le seuil : une petite bosse qui retombe, légendée « sous le seuil : rien ne part ».
- Panneau central — le codage en fréquence. Trois enregistrements superposés, correspondant à trois stimulations d'intensité croissante indiquée à gauche. Les pics ont exactement la même hauteur dans les trois cas, mais sont de plus en plus rapprochés. À droite de chaque ligne, le nombre de potentiels d'action par seconde. Cartouche : « l'amplitude ne change pas, la fréquence augmente ».
- Panneau droit — le circuit du réflexe myotatique. Le muscle et son fuseau neuromusculaire, le neurone sensitif qui monte vers une coupe de moelle épinière, une seule synapse dans la moelle, le motoneurone qui redescend vers le même muscle. Les distances et sont portées le long des deux fibres, la vitesse à côté de l'une d'elles, et le délai synaptique au point de contact. L'encéphale figure en haut, relié par un trait fin et clairement séparé du circuit, avec la mention « informé après coup, pas dans la boucle ». Un agrandissement de la synapse montre les vésicules, la fente et les récepteurs, avec la mention « électrique, puis chimique, puis électrique ».
Ce qu'il faut lire. Le panneau gauche fixe la forme et l'amplitude, le panneau central montre que cette amplitude ne varie pas d'une intensité à l'autre — donc qu'elle ne peut rien coder — et le panneau droit relie ces signaux à un circuit anatomique dont on sait calculer la durée.
La figure en détail : la figure comprend trois parties. À gauche, un graphique représente le potentiel de membrane d'un neurone, en millivolts, en fonction du temps, en millisecondes. Le tracé part d'une ligne horizontale à moins soixante-dix millivolts appelée potentiel de repos, franchit une seconde ligne horizontale appelée seuil, monte brusquement jusqu'à plus trente millivolts, redescend en passant brièvement sous la valeur de repos, puis y revient ; une double flèche indique une amplitude de cent millivolts et une accolade marque la période réfractaire. Un tracé plus pâle montre une stimulation qui reste sous le seuil et ne déclenche rien. Au centre, trois enregistrements superposés correspondent à trois stimulations de plus en plus intenses : les pics gardent la même hauteur dans les trois cas, mais deviennent de plus en plus rapprochés, et le nombre de potentiels d'action par seconde augmente. À droite, un schéma du réflexe myotatique montre un muscle et son fuseau neuromusculaire, un neurone sensitif qui rejoint la moelle épinière, une synapse unique, un motoneurone qui revient au même muscle, ainsi que les deux distances parcourues, la vitesse de conduction et le délai synaptique ; l'encéphale, dessiné à part, est relié par un trait fin et signalé comme informé après coup, hors de la boucle du réflexe.
Bloc 5 sur 7 · Formules
Ce qu'il faut retenir
| Notion | Énoncé | Domaine de validité |
|---|---|---|
| Potentiel de repos | l'intérieur du neurone est négatif par rapport à l'extérieur, de l'ordre de mV | neurone non stimulé ; valeur toujours donnée dans l'énoncé |
| Potentiel d'action | dépolarisation brève, jusqu'à environ mV, suivie d'un retour au repos | déclenché seulement si le seuil est atteint |
| Loi du tout ou rien | le potentiel d'action a toujours la même amplitude, ou n'existe pas | une fibre donnée |
| Codage de l'intensité | par la fréquence des potentiels d'action, et par le nombre de fibres recrutées | jamais par l'amplitude |
| Propagation | régénérée de proche en proche, donc sans affaiblissement | vitesse fixée par le diamètre et la myéline, pas par le stimulus |
| Synapse | message électrique converti en message chimique, puis de nouveau électrique | transmission à sens unique, délai de l'ordre de à ms |
| Réflexe myotatique | récepteur, neurone sensitif, moelle épinière, motoneurone, muscle | une seule synapse, sans passage par l'encéphale |
Les unités. Un potentiel de membrane et une amplitude en millivolts ; une fréquence en hertz, c'est-à-dire en nombre de potentiels d'action par seconde ; une durée en millisecondes ; une distance en mètres et une vitesse en mètres par seconde. Avant toute division, ramène la fenêtre de comptage en secondes et les distances en mètres.
Ce qui n'est pas au programme. Le calcul du potentiel de membrane à partir des concentrations ioniques, la modélisation des courants qui engendrent le potentiel d'action, et la pharmacologie détaillée des synapses relèvent de l'enseignement supérieur. En terminale, on décrit le mécanisme, on lit un enregistrement, on compte une fréquence et on additionne des durées.
Bloc 6 sur 7 · Pièges
Pièges fréquents
- Croire que l'amplitude du potentiel d'action code l'intensité du stimulus. C'est l'erreur la plus répandue, et la loi du tout ou rien l'interdit : sur une fibre donnée, tous les potentiels d'action ont la même amplitude. L'intensité est codée par la fréquence. Devant un tableau à trois stimulations, regarde d'abord la colonne des amplitudes : si elle est constante, elle ne code rien.
- Penser que sous le seuil la fibre émet un petit potentiel d'action. Sous le seuil, la dépolarisation locale s'éteint sur place : il n'y a rien, ni tout de suite, ni plus tard, ni en plus petit. Tout ou rien signifie exactement cela.
- Croire que le message traverse la synapse sous forme électrique. La fente synaptique interrompt la propagation électrique. Le message est converti en message chimique — un neurotransmetteur libéré par exocytose — puis reconverti en message électrique de l'autre côté. C'est cette conversion qui impose le sens unique et le délai synaptique.
- Oublier que le réflexe myotatique ne passe pas par l'encéphale. Il est traité dans la moelle épinière, par une seule synapse. Ajouter un détour par l'encéphale dans la chaîne, c'est décrire un mouvement volontaire, pas un réflexe — et cela ferait aussi ajouter des synapses à un calcul de latence.
- Confondre le nerf et le neurone. Le neurone est une cellule ; le nerf est un faisceau qui en contient des milliers. Le recrutement d'un plus grand nombre de fibres dans un nerf n'a rien à voir avec l'amplitude du potentiel d'action d'une fibre isolée.
- Croire qu'une stimulation plus forte accélère la propagation. La vitesse dépend du diamètre de la fibre et de la présence de myéline, jamais de l'intensité du stimulus. Une stimulation plus forte donne des potentiels d'action plus nombreux, pas plus rapides.
- Se tromper de signe dans le calcul de l'amplitude. Le potentiel de repos est négatif, le pic est positif : l'écart s'obtient en soustrayant une valeur négative, donc en additionnant les deux valeurs absolues. Une amplitude de mV entre et mV est le signe d'une soustraction mal conduite.
- Oublier de convertir la fenêtre de comptage. Une fréquence est un nombre par seconde : compter huit potentiels d'action en ms ne donne pas Hz mais Hz. La conversion se fait avant la division, jamais après.
Bloc 7 sur 7 · Vérifier
Vérifier : ce qui code l'intensité de la stimulation
Le modèle d'entraînement. L'exercice associé à cette leçon présente un tableau construit à partir de stimulations d'intensité croissante appliquées à une même fibre : une colonne donne l'amplitude des potentiels d'action, une autre leur nombre par seconde. Selon la question tirée, il faut désigner le paramètre qui code l'intensité, dire ce qui se passe sous le seuil, nommer la nature du message à la synapse, ou remettre dans l'ordre la chaîne du réflexe myotatique. Un modèle voisin, numérique, fait calculer une fréquence à partir d'une fenêtre de comptage, une durée de propagation par la relation , la latence d'un réflexe ou l'amplitude d'un potentiel d'action.
Énoncé type. On stimule une fibre nerveuse isolée avec des intensités croissantes et l'on enregistre les potentiels d'action émis :
| Intensité de la stimulation (unité arbitraire) | Amplitude des potentiels d'action (mV) | Potentiels d'action par seconde (Hz) |
|---|---|---|
Quel paramètre du message nerveux code l'intensité de la stimulation ?
Corrigé complet.
1. Lire la colonne des amplitudes. Elle vaut mV aux trois lignes. Une grandeur qui ne varie pas quand l'intensité varie ne peut coder aucune information sur cette intensité : l'amplitude est éliminée, et avec elle la réponse que la plupart des élèves donnent d'instinct.
2. Lire la colonne des potentiels d'action par seconde. Elle passe de à puis à Hz quand l'intensité passe de à puis à . Cette grandeur, elle, suit la stimulation.
3. Nommer. Le nombre de potentiels d'action par seconde est leur fréquence.
Réponse : c'est la fréquence des potentiels d'action, qui augmente quand la stimulation est plus forte, alors que leur amplitude ne change pas.
Pourquoi les autres propositions tombent. La vitesse de propagation dépend du diamètre de la fibre et de sa gaine de myéline, pas de l'intensité de la stimulation, et le tableau ne la mentionne même pas. La durée de chaque potentiel d'action est fixe, de l'ordre de la milliseconde, quelle que soit la stimulation. Le potentiel de repos est une propriété de la membrane au repos : il ne porte aucun message.
Auto-contrôle. Ai-je bien commencé par chercher, dans le tableau, la colonne qui varie avec l'intensité ? Ai-je vérifié que la colonne des amplitudes est constante, plutôt que de répondre de mémoire ? Et ma réponse contient-elle le mot fréquence, ou seulement une paraphrase qui pourrait aussi bien désigner l'amplitude ?
Sources
- BO spécial n°8 du 25 juillet 2019 — programme de spécialité sciences de la vie et de la Terre de terminale générale, thème « Corps humain et santé » : comportements, mouvement et système nerveux, le réflexe myotatique
- N. Campbell, J. Reece et al., Biologie, Pearson — chapitres consacrés aux neurones, au potentiel d'action et à la transmission synaptique (potentiel de repos, loi du tout ou rien, vitesses de conduction, délai synaptique)
Continuer
Autres leçons — Biologie
- Le croisement monohybride : prévoir la descendance pour un gène
- Chromosomes et caryotype : l'information génétique rangée par paires
- Gènes et allèles : pourquoi deux individus ne se ressemblent pas
- Reproduction sexuée : comment les chromosomes passent d'une génération à l'autre
- Arbres phylogénétiques : lire la parenté entre les espèces
- Le système nerveux : capter, décider, commander
- La communication hormonale : un message porté par le sang
- Observer au microscope
- La cellule, unité du vivant
- Classification emboîtée du vivant
- Écosystèmes et réseaux trophiques
- Digestion et nutriments
- Respiration et échanges gazeux
- La circulation sanguine
- La cellule eucaryote : des compartiments spécialisés
- L'ADN : une double hélice porteuse d'information
- La sélection naturelle : un tri sans intention
- La dérive génétique : quand le hasard seul fait évoluer
- La biodiversité : trois échelles sous pression
- Cycle cellulaire et mitose : copier, puis répartir
- La réplication de l'ADN : une copie semi-conservative
- Du gène à la protéine : transcription et traduction
- Les mutations : quand la copie change le texte
- Les enzymes : des protéines qui catalysent
- L'immunité adaptative : spécifique, amplifiée, mémorisée
- La méiose : diviser par deux, et brasser
- Deux gènes à la fois : indépendants ou liés ?
- L'équilibre de Hardy-Weinberg : le modèle de référence
- La régulation de la glycémie
- Contraction musculaire et énergie
- La photosynthèse : de la lumière à la matière
- La respiration cellulaire et l'ATP
- Le cycle du carbone
- L’immunité innée : une première défense immédiate
- Cinétique michaélienne et inhibitions enzymatiques
- La vaccination : préparer la mémoire immunitaire
- Acides aminés : ionisation, zwitterion, point isoélectrique
- Échanges membranaires : diffusion, osmose, transport actif
- La PCR : copier des millions de fois une région choisie